
Resumen 🔥
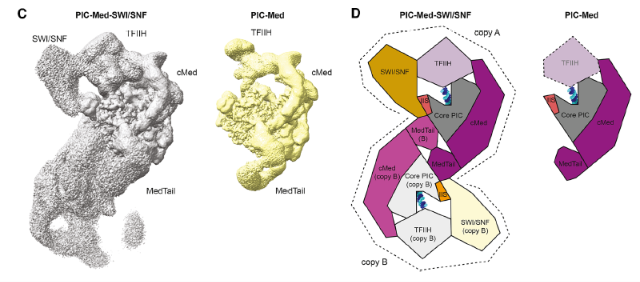
Durante décadas, la biología molecular enseñó que las maquinarias de remodelación de la cromatina (como el complejo SWI/SNF) actuaban de manera independiente, despejando el ADN antes de que llegara la maquinaria de transcripción. Sin embargo, un deslumbrante estudio publicado en Cell rompe este paradigma al revelar, mediante crio-microscopía electrónica (cryo-EM), que SWI/SNF es un componente integral del complejo de preiniciación (PIC) de la ARN polimerasa II. Juntos forman una estructura dimérica gigantesca de 7 megadaltones (7 MDa) que coordina directamente el desenrollado del ADN y la movilización del nucleosoma +1, cambiando para siempre la forma en que entendemos la activación génica.

El Paradigma Roto: De Trabajadores Independientes a una Supermaquinaria Unificada 🏗️✨
¡GRACIAS POR LEER NUESTRAS NOTICIAS! ¿Nos invitas un cáfe? ☕

Hasta ahora, la visión clásica dividía la iniciación de la transcripción en dos pasos secuenciales e independientes:
- Remodelación de la cromatina: SWI/SNF desplazaba o reposicionaba los nucleosomas para despejar la región del promotor.
- Ensamble del PIC: La ARN Polimerasa II, junto con Mediator y los factores generales de transcripción (GTFs), se unían al ADN libre para comenzar la transcripción.
El laboratorio de Roger D. Kornberg y colaboradores demostró que esta separación era solo una ilusión por falta de resolución. En realidad, SWI/SNF se ensambla físicamente con la ARN Pol II, Mediator y el nucleosoma +1, formando un megacomplejo estable.

Hallazgos Clave de la Arquitectura Estructural 🔍🧩
- Dimero Gigantesco de 7 MDa: La adición de SWI/SNF induce la dimerización del complejo PIC-Mediator a través del módulo de la cola de Mediator (MedTail). La estructura final alcanza dimensiones de
y engloba 64 polipéptidos por complejo.

- El Motor de Dos Translocasas (Snf2 + Ssl2): El modelo revela una acción coordinada sin precedentes entre dos motores moleculares (DNA translocasas). Snf2 (de SWI/SNF) empuja el ADN hacia el díada del octámero de histonas, mientras que Ssl2 (de TFIIH) tracciona el ADN corriente arriba hacia el centro activo de la ARN Pol II.

- Mapeo Físico de Contactos Específicos:
- Contacto SWI/SNF – TFIIH: La hélice
de Snf5 interactúa directamente con el dominio de dimerización Tfb2-Tfb5 de TFIIH. Complementariamente, el motivo EBM de Snf5 y el dominio ET de Taf14 se unen a un parche hidrofóbico en Tfb2.
- Pinza en el Nucleosoma +1: SWI/SNF atrapa el nucleosoma +1 mediante dos puntos de anclaje: el dominio ATPasa de Snf2 en la posición superhelicoidal SHL+2 y el parche básico (BP) de Snf5 en el parche ácido del octámero de histonas (H2A-H2B).
- Contacto SWI/SNF – TFIIH: La hélice

- Exclusión Mutua con TFIID: La superposición estructural demuestra que SWI/SNF y TFIID chocan estericamente entre sí en el PIC. Esto explica por qué SWI/SNF opera de forma preferencial en genes regulados por estrés con caja TATA, mientras que TFIID domina en genes constitutivos (“housekeeping”).

Relevancia Biológica y Futuro 🚀🧪
Este descubrimiento posiciona a SWI/SNF como una regla molecular que mide y ajusta la distancia exacta entre el nucleosoma +1 y la caja TATA (aproximadamente 81 bp tanto en levaduras como en metazoos). Además, la dimerización inducida sugiere un mecanismo estructural donde promotores co-regulados o bidireccionales se aproximan físicamente para una expresión génica coordinada durante la respuesta a estrés celular.
Bibliografía 📚
- Nagai, S., Yang, C., Chen, D.-H., Trnka, M. J., Bushnell, D. A., Burlingame, A. L., Murakami, K., & Kornberg, R. D. (2026). Structural basis of a SWI/SNF-associated transcription pre-initiation complex. Cell, 189(22), 1–18. https://doi.org/10.1016/j.cell.2026.08.020






Deja una respuesta